Kardiomiyotsitning energetik almashinuvi: substratdan qisqarishgacha
1. ATF — hujayraning tezkor energetik valyutasi
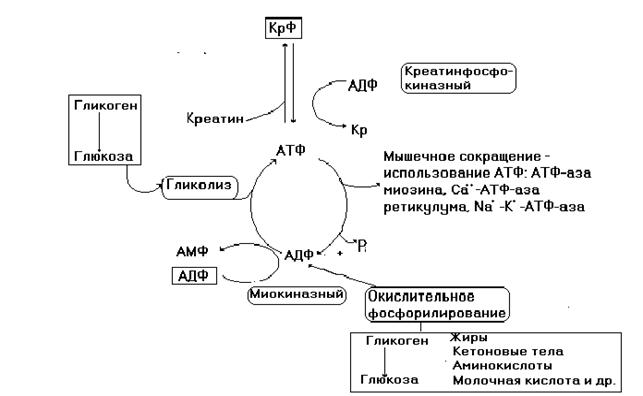
Adenozin trifosfat (ATF) adenin, riboza va uchta fosfat qoldig‘idan iborat. ATF gidrolizi kuchli ekzoergik jarayon bo‘lib, hosil bo‘lgan ADF va noorganik fosfat rezonans, gidratatsiya va elektrostatik barqarorlashuv tufayli energiya jihatidan qulayroq holatga o‘tadi. Shu energiya mushak qisqarishi, faol transport va biosintez kabi energiya talab qiluvchi jarayonlar bilan bog‘lanadi.
Standart biokimyoviy ΔG°′ ≈ −30,5 kJ/mol; hujayradagi haqiqiy ΔG ATF/ADF/Pi nisbatiga bog‘liq va odatda yanada manfiy bo‘ladi.
2. Yurak ATF ni qayerda sarflaydi?
- Miozin ATF-azasi: aktin–miozin ko‘priklarining siklik ishlashi va mexanik kuch hosil bo‘lishi.
- SERCA: Ca²⁺ ni sarkoplazmatik retikulumga qaytarib, yurak mushagining bo‘shashishini ta’minlaydi.
- Na⁺/K⁺-ATF-aza: Na⁺ va K⁺ gradientini saqlaydi, bu qo‘zg‘aluvchanlik va membrana potensiali uchun muhim.
- Boshqa jarayonlar: membrana transporti, oqsil almashinuvi, signal tizimlari va organellalar funksiyasi.
3. Yurakning metabolik moslashuvchanligi
Sog‘lom yurak turli yoqilg‘ilarni oksidlashi mumkin. Substrat tanlovi qon tarkibi, insulin va katexolaminlar, jismoniy yuklama hamda kislorod yetkazib berilishiga qarab o‘zgaradi. Katta yoshdagi normal yurakda yog‘ kislotalari ko‘pincha asosiy oksidlovchi substrat hisoblanadi, ammo glyukoza, laktat va keton tanachalari ham muhim energiya manbalaridir.
| Substrat | Asosiy yo‘l | Mahsulot | Yurak uchun ahamiyati |
|---|---|---|---|
| Glyukoza | Glikoliz → piruvat → PDH | ATF, NADH, asetil-CoA | Kislorodga nisbatan samarali yoqilg‘i; ishemiya sharoitida ahamiyati ortadi. |
| Yog‘ kislotalari | Karnitin shatli → β-oksidlanish | Asetil-CoA, NADH, FADH₂ | Yuqori umumiy ATF chiqimi; normal katta yoshdagi yurakning muhim yoqilg‘isi. |
| Laktat | Laktatdegidrogenaza → piruvat | Piruvat → asetil-CoA | Jismoniy yuklamada qon laktati ortganda yurak tomonidan faol oksidlanishi mumkin. |
| Keton tanachalari | Ketoliz | Asetil-CoA | Ochlik va ayrim patologik holatlarda ulushi ortadi. |
| Aminokislotalar | Katabolizm → TsTK oraliq moddalari | Asetil-CoA/intermediatlar | Energetik ulushi kichikroq, lekin metabolik integratsiya uchun muhim. |
4. Glikoliz — glyukozadan piruvatgacha bo‘lgan 10 bosqich
Glikoliz sitozolda kechadi va kislorodni bevosita talab qilmaydi. Dastlab 2 ATF sarflanadi, keyingi bosqichlarda 4 ATF va 2 NADH hosil bo‘ladi. Bir glyukoza uchun sof natija: 2 ATF, 2 NADH va 2 piruvat.
| Bosqich | Reaksiya | Ferment | Muhim nuqta |
|---|---|---|---|
| 1 | Glyukoza → glyukoza-6-fosfat | Geksokinaza | ATF sarflanadi. |
| 2 | G6F → F6F | Fosfoglyukoza izomeraza | Izomerlanish. |
| 3 | F6F → F1,6-bisF | Fosfofruktokinaza-1 | Glikolizning asosiy boshqariluvchi bosqichi. |
| 4–5 | F1,6-bisF → ikkita C3 birikma | Aldolaza + triozofosfat izomeraza | Olti uglerodli skelet ikkiga bo‘linadi. |
| 6 | GAF → 1,3-bisfosfogliserat | GAF-degidrogenaza | NADH hosil bo‘ladi. |
| 7 | 1,3-BFG → 3-fosfogliserat | Fosfogliseratkinaza | Substrat darajasida ATF hosil bo‘ladi. |
| 8–9 | 3-FG → 2-FG → FEP | Mutaza + enolaza | Yuqori fosfat-transfer potensialli FEP hosil bo‘ladi. |
| 10 | FEP → piruvat | Piruvatkinaza | Substrat darajasida ATF hosil bo‘ladi. |
PFK-1 yuqori ATF va sitratda tormozlanadi, AMP/ADF va fruktoza-2,6-bisfosfat ta’sirida faollashadi. Shuning uchun hujayraning energetik talabi ortganda glikoliz tezlashadi.
5. Piruvatdegidrogenaza kompleksi (PDH)
Aerob sharoitda piruvat mitoxondriyaga kirib, PDH kompleksi orqali qaytmas tarzda asetil-CoA ga aylanadi. Bu bosqich glikolizni Krebs sikli bilan bog‘laydi.
PDH uchun beshta klassik kofaktor kerak: TPP (B₁), lipoat, CoA (B₅), FAD (B₂) va NAD⁺ (B₃). PDH-kinaza fermentni fosforlab tormozlaydi, PDH-fosfataza esa defosforlab faollashtiradi. Ishlayotgan mushakdagi Ca²⁺ PDH faolligini oshirishga yordam beradi.
6. Yog‘ kislotalarining β-oksidlanishi va karnitin shatli
Uzun zanjirli yog‘ kislotalari avval asil-CoA ga faollashtiriladi. Ichki mitoxondrial membranadan o‘tish uchun CPT-I → karnitin/asikarnitin translokaza → CPT-II tizimi ishlaydi. Matriksda β-oksidlanishning to‘rt takrorlanuvchi bosqichi — FAD-ga bog‘liq oksidlanish, gidratatsiya, NAD⁺-ga bog‘liq oksidlanish va tioliz — amalga oshadi.
Har bir sikl 1 FADH₂, 1 NADH va asetil-CoA hosil qiladi hamda yog‘ kislotasi zanjirini ikki uglerodga qisqartiradi. Palmitat (C16:0) ning to‘liq oksidlanishi zamonaviy P/O koeffitsientlari bo‘yicha faollashtirish xarajati chiqarilgandan so‘ng taxminan 106 ATF beradi. Malonil-CoA CPT-I ni tormozlaydi.
7. Krebs sikli (trikarbon kislotalar sikli)
| № | Reaksiya | Ferment | Energetik mahsulot |
|---|---|---|---|
| 1 | Asetil-CoA + oksaloatsetat → sitrat | Sitrat sintaza | — |
| 2 | Sitrat ↔ izositrat | Akonitaza | — |
| 3 | Izositrat → α-ketoglutarat + CO₂ | Izositratdegidrogenaza | NADH |
| 4 | α-Ketoglutarat → suksinil-CoA + CO₂ | α-KGDH kompleksi | NADH |
| 5 | Suksinil-CoA → suksinat | Suksinil-CoA sintetaza | GTF |
| 6 | Suksinat → fumarat | Suksinatdegidrogenaza | FADH₂ |
| 7 | Fumarat → malat | Fumaraza | — |
| 8 | Malat → oksaloatsetat | Malatdegidrogenaza | NADH |
Bir asetil-CoA uchun natija: 3 NADH + 1 FADH₂ + 1 GTF + 2 CO₂, bu oksidlovchi fosforlanishdan keyin taxminan 10 ATF-ekvivalentiga teng. Suksinatdegidrogenaza bir vaqtning o‘zida Krebs sikli fermenti va nafas olish zanjirining II-kompleksi hisoblanadi.
8. Elektron transport zanjiri va oksidlovchi fosforlanish
| Komponent | Elektron manbai | Keyingi tashuvchi | H⁺ pompalanishi |
|---|---|---|---|
| I-kompleks | NADH | Koenzim Q | Ha |
| II-kompleks | FADH₂ | Koenzim Q | Yo‘q |
| III-kompleks | QH₂ | Sitoxrom c | Ha |
| IV-kompleks | Sitoxrom c | O₂ → H₂O | Ha |
| V-kompleks | Proton gradienti | ADF + Pi | ATF sintez qiladi |
I, III va IV komplekslar H⁺ ni matriksdan membranalararo bo‘shliqqa chiqarib, proton-harakatlantiruvchi kuch hosil qiladi. Protonlar F₀F₁-ATF-sintaza orqali qaytadi va ADF + Pi dan ATF hosil bo‘ladi. Kislorod elektronlarning yakuniy akseptoridir.
FADH₂ → ≈1,5 ATF
1 glyukozaning to‘liq aerob oksidlanishi → odatda ≈30–32 ATF.
9. Sitozoldagi NADH uchun shatl tizimlari
NADH ichki mitoxondrial membranadan to‘g‘ridan-to‘g‘ri o‘ta olmaydi. Malat-aspartat shatli qaytaruvchi ekvivalentlarni mitoxondrial NAD⁺ ga uzatadi va yuqori energetik samaradorlikni saqlaydi. Glitserol-3-fosfat shatli elektronlarni FAD ga uzatadi va har bir sitozol NADH uchun kamroq ATF beradi. Yurakda malat-aspartat shatli katta ahamiyatga ega.
10. Kreatinkinaza–fosfokreatin tizimi
Mitoxondrial kreatinkinaza yangi hosil bo‘lgan ATF dan fosfat guruhini kreatinga o‘tkazib, fosfokreatin (FKr) hosil qiladi. FKr miofibrillalar, SERCA va membrana ATF-azalariga yaqin joylarga diffuziya qiladi. Sitozoldagi kreatinkinaza ADF ni tezda ATF ga qayta fosforlaydi.
Bu tizim ATF ni vaqt bo‘yicha buferlaydi va energiyani fazoviy tashiydi.
11. Aktin–miozin siklida ATF
- ATF miozin boshchasiga bog‘lanib, miozinni aktindan ajratadi.
- ATF → ADF + Pi gidrolizi miozin boshchasini yuqori energetik holatga keltiradi.
- Pi ajralishi kuch hosil qiluvchi ishchi harakatni boshlaydi.
- ADF ajraladi; yangi ATF keyingi ajralish va sikl uchun kerak.
12. Ca²⁺ — qisqarish va energetika o‘rtasidagi bog‘lovchi signal
Yuklama ortganda Ca²⁺ nafaqat miofilamentlarni faollashtiradi, balki mitoxondrial metabolizmni ham kuchaytiradi. Ca²⁺ PDH-fosfataza, izositratdegidrogenaza va α-ketoglutaratdegidrogenaza faolligini oshirib, NADH va ATF ishlab chiqarilishini mexanik talab bilan moslashtiradi.
13. Substratlar o‘rtasidagi raqobat — Rendl sikli
Yog‘ kislotalarining yuqori oksidlanishi asetil-CoA va NADH ni ko‘paytirib PDH ni tormozlashi va glyukoza oksidlanishini kamaytirishi mumkin. Aksincha, glyukozadan faol foydalaniladigan holatlarda malonil-CoA CPT-I ni cheklab yog‘ kislotalarining mitoxondriyaga kirishini kamaytirishi mumkin.
14. Gipoksiya va ishemiyada nima sodir bo‘ladi?
Kislorod yetishmasa elektron transport zanjiri sekinlashadi, NADH qayta oksidlanishi pasayadi va NAD⁺ tanqisligi yuzaga keladi. PDH hamda Krebs sikli oqimi kamayadi, glikoliz esa nisbatan muhimlashadi. Piruvat laktatga aylanishi orqali NAD⁺ tiklanadi, ammo anaerob glikoliz atigi 2 ATF beradi.
- Fosfokreatin zaxirasi kamayadi.
- SERCA uchun energiya yetishmaydi va diastolik bo‘shashish yomonlashadi.
- Na⁺/K⁺-ATF-aza faoliyati pasayib ion gradientlari buziladi.
- H⁺ va laktat to‘planishi pH ni pasaytiradi.
- Reperfuzion davrda faol kislorod shakllari hosil bo‘lishi mumkin.
15. Energetik balans — yodda saqlash uchun
| Jarayon | Bevosita ATF/GTF | Qaytarilgan kofermentlar | Taxminiy natija |
|---|---|---|---|
| Glikoliz | 2 ATF sof | 2 NADH | Anaerob: 2 ATF; aerob: shatl orqali ko‘proq. |
| PDH (1 glyukoza) | 0 | 2 NADH | Glikolizni TsTK bilan bog‘laydi. |
| TsTK (2 asetil-CoA) | 2 GTF | 6 NADH + 2 FADH₂ | ≈20 ATF-ekvivalent. |
| Glyukozaning to‘liq oksidlanishi | Substrat + OXPHOS | NADH/FADH₂ | ≈30–32 ATF. |
| Palmitat | — | β-oksidlanish + TsTK | ≈106 ATF sof. |
Asosiy darsliklar
- Harper’s Illustrated Biochemistry, 33-nashr.
- Nelson, Cox, Hoskins. Lehninger Principles of Biochemistry, 8-nashr.
- Berg, Gatto, Hines, Tymoczko, Stryer. Biochemistry, 10-nashr.
- Lippincott Illustrated Reviews: Biochemistry, 9-nashr.